ミトコンドリアオートファジーにおける脂質膜形成の開始因子:
ATG9A小胞の集積メカニズムを解明
品質管理プロジェクトでは、細胞内ではたらくタンパク質やオルガネラの品質管理メカニズムを明らかにする研究を進めています。
本研究において、当プロジェクトの山野晃史プロジェクトリーダー、小島和華主任研究員、遠藤龍研修生、および京都大学の尾勝圭助教らの共同研究グループは、ミトコンドリア選択的なオートファジー(マイトファジー)において、オートファジーアダプターであるOPTNが「分解対象を包み込む脂質膜形成の開始」に不可欠なATG9A小胞をリクルートする詳細なメカニズムを明らかにしました。
本研究成果は、2026年9月1日(火)に国際学術誌「Autophagy」のオンライン版に掲載されました。
論文情報
- <論文タイトル>
- “RAB1 mediates OPTN-dependent mitophagy via ATG9A recruitment”
(RAB1はATG9Aのミトコンドリアへのリクルートを介してOPTN依存的マイトファジーを制御する) - <発表雑誌>
- Autophagy
DOI: 10.1080/15548627.2026.2728346
URL: https://www.tandfonline.com/doi/full/10.1080/15548627.2026.2728346#d1e453
研究の背景
オートファジーは、細胞内で不要となったタンパク質や機能不全に陥ったオルガネラ(細胞小器官)を分解・排除するシステムであり、我々の体を構成するあらゆる細胞に備わっています。
ミトコンドリアは、エネルギー産生や代謝、細胞死の制御など、細胞の生命活動の要となる重要なオルガネラです。そのため、機能の低下したミトコンドリアを選択的に排除する「マイトファジー(ユビキチンリガーゼであるParkin依存的なマイトファジー)」は、細胞の恒常性維持に極めて重要な役割を果たしています。
研究グループはこれまで、損傷ミトコンドリアに付加されたユビキチン鎖(分解の標識となる小さなタンパク質の鎖)と隔離膜(分解物を包み込む脂質膜)を結びつけるオートファジーアダプターの機能について研究を進めてきました。
近年の研究において、オートファジーアダプターの1つであるOPTNが、隔離膜形成の起点(シード)となるATG9A小胞を損傷ミトコンドリアにリクルートすることを発見しました。これにより、オートファジーアダプターは単に「損傷ミトコンドリアと隔離膜をつなぐ役割」だけでなく、「隔離膜の形成の開始に不可欠なタンパク質をリクルートする役割」も担うという、マイトファジーの駆動における重要性が明らかになってきました。
本研究では、OPTNがATG9A小胞を集積させる際、その仲介役として小胞輸送の制御因子RAB1が不可欠であることを突き止めました。これにより、OPTNによるマイトファジー駆動の分子機構の全貌を明らかにしました。
研究の概要
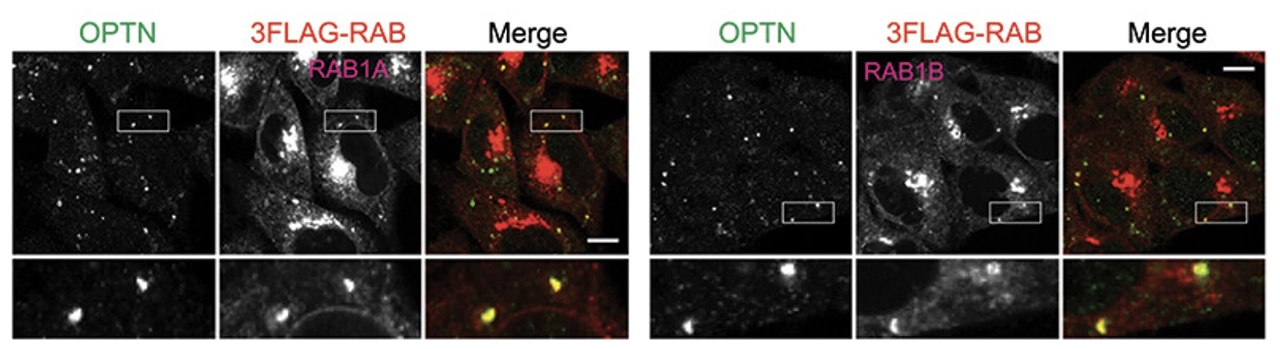
RAB GTPase(RABタンパク質)は、ヒトには約60種類存在し、細胞内の小胞輸送を制御する分子スイッチとして機能します。本研究では、まずParkin依存的なマイトファジーにおいて、OPTNと協力して働くRABタンパク質を探索しました。その結果、RAB1タンパク質(RAB1AおよびRAB1B)がOPTNと直接結合する新たなパートナーであることを突き止めました。【図1】。
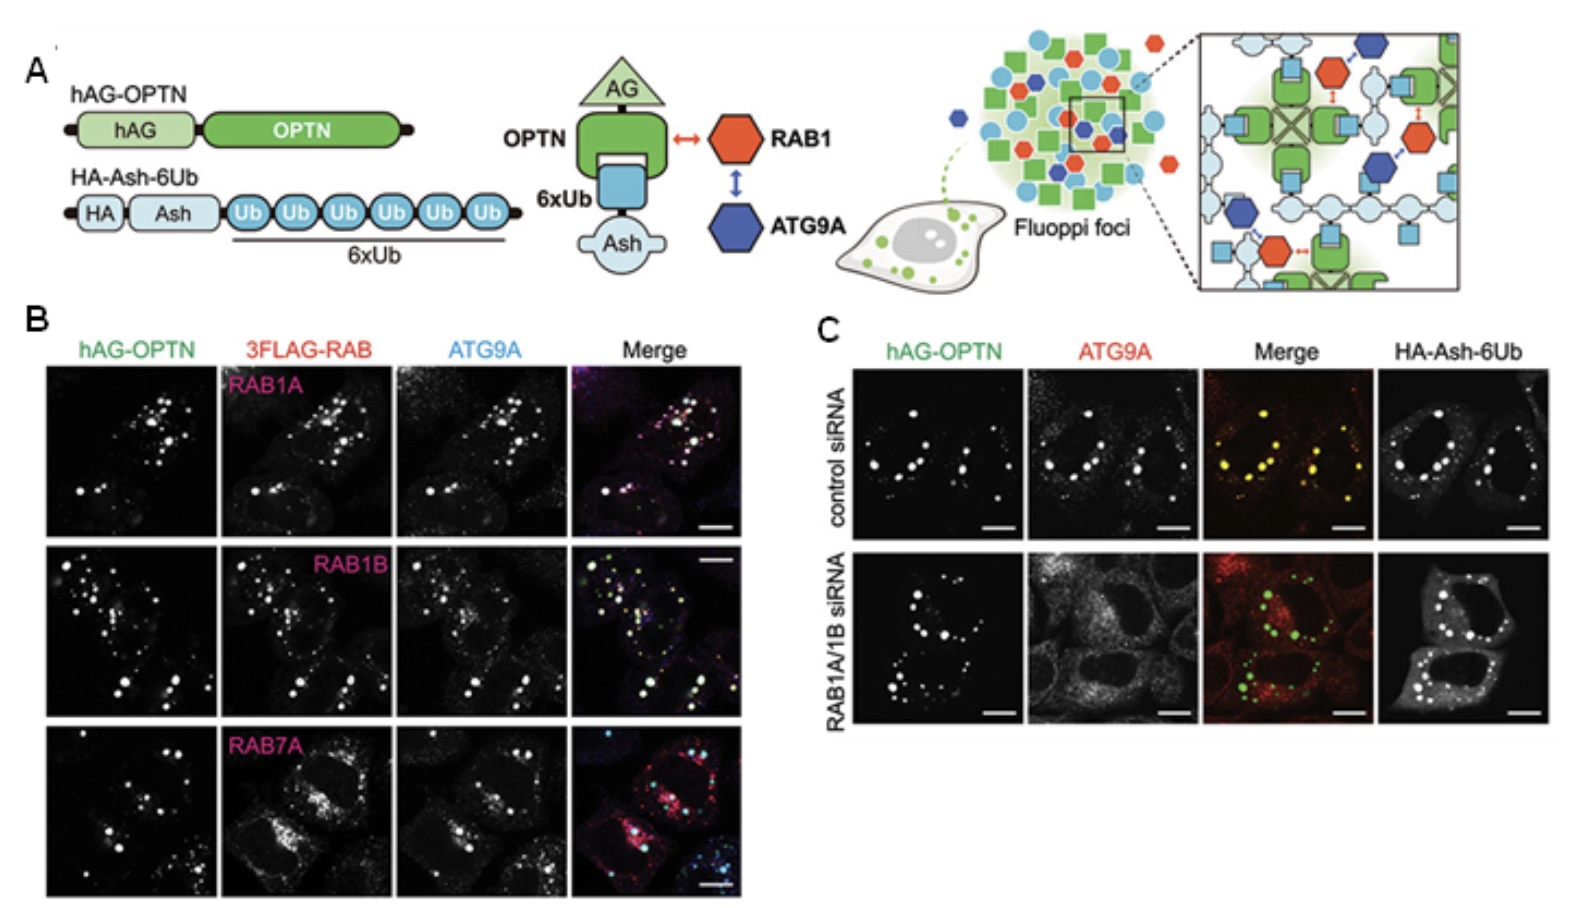
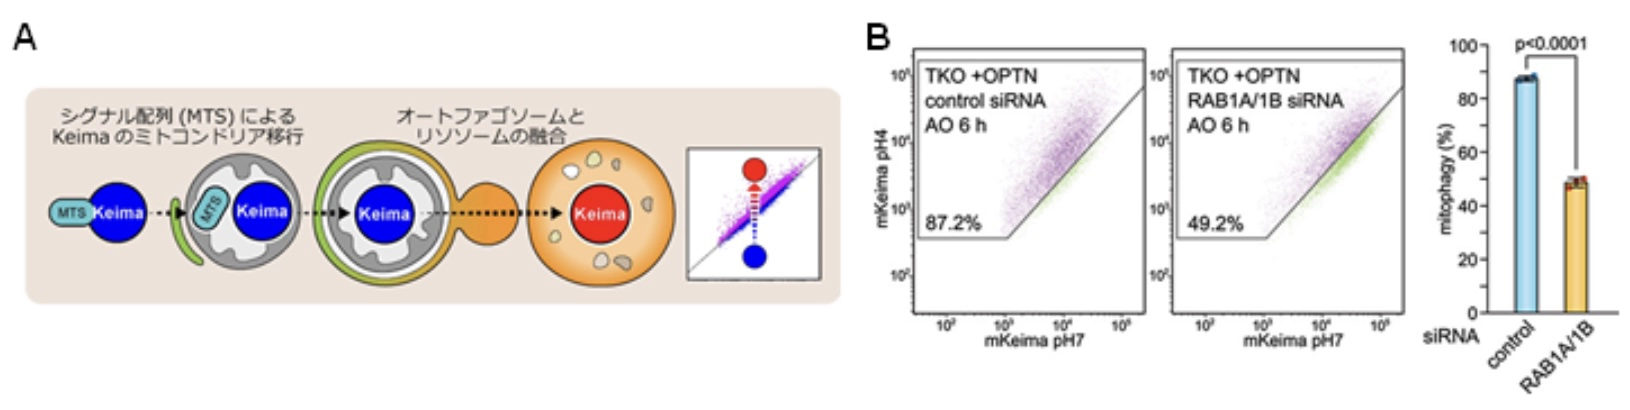
独自に構築した細胞内タンパク質間相互作用解析システム【図2-A】を用いて詳細に調べたところ、RAB1の存在量を低く抑えた細胞では、OPTNがいくら集積しても隔離膜の材料となるATG9A小胞をリクルートさせることができなくなることがわかりました(RNAiによるRAB1AとRAB1の発現抑制【図2-B】)。また、RAB1の量を低く抑えた細胞では、OPTN依存的なマイトファジーそのものが抑制されることもわかりました【図3】。
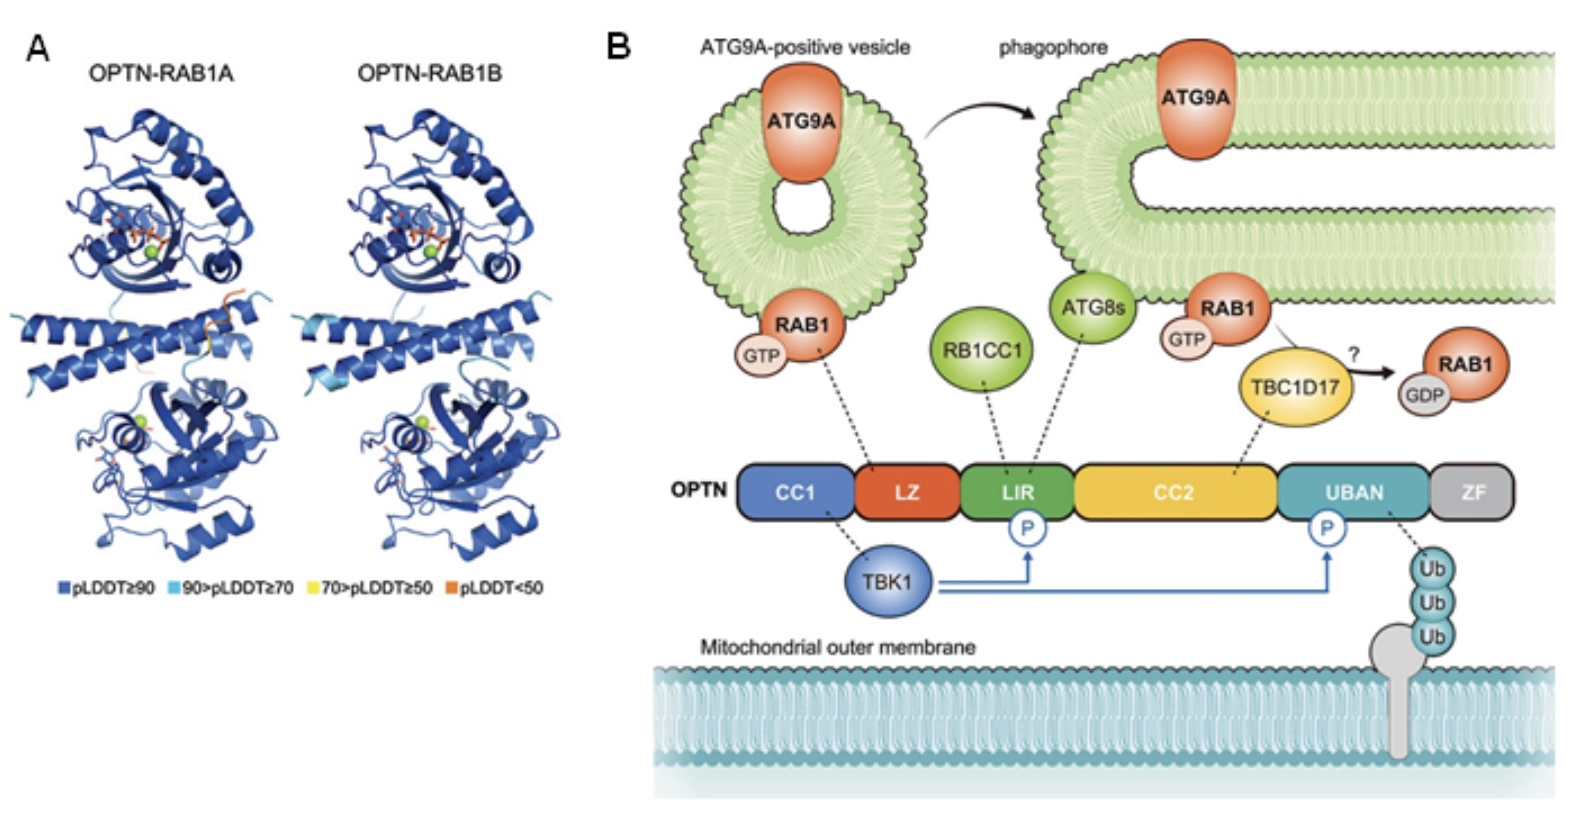
さらに、タンパク質立体構造予測ツール(AlphaFold)と変異体解析を組み合わせることで、OPTNとRAB1が結合する部位を特定しました。
OPTNはUBANドメインを介してユビキチン(Ub)鎖と相互作用し、LIRやCC1ドメインを介して他のオートファジー因子と相互作用することが既に知られています。今回の研究で、OPTNがLZドメインを介してRAB1と直接相互作用し、RAB1を含むATG9A小胞を損傷ミトコンドリア周辺へ効率よく引き寄せることが、マイトファジーにおける「隔離膜形成を開始させる駆動力」となることが示されました【図4】。
研究の意義
オートファジーの機能不全は、様々な疾患の発症に繋がることがわかっています。特に、不良なミトコンドリアを選択的に排除するマイトファジーの破綻は、パーキンソン病をはじめとする神経変性疾患の発症と密接に関連していることが知られています。本研究によって、オートファジーアダプターがどのようにして効率よく隔離膜の形成を損傷ミトコンドリア上で開始させるのか、その精密な分子メカニズムが明らかになりました。このようなオートファジーの基本原理の解明は、未だ不明な点の多いオートファジー機能低下に起因する疾患の病態解明や、将来的な治療法の開発につながる基盤となることが期待されます。
本研究は、日本学術振興会(JSPS)科学研究費助成事業(科研費):26K18571、19K16068、21K15084、24H01894、18H05501、23K23841、23H04923、科学技術振興機構(JST)次世代研究者挑戦的研究プログラム(SPRING):JPMJSP2180、日本医療研究開発機構(AMED)革新的先端研究開発支援事業(AMED-CREST):JP20gm1410004、(AMED-PRIME):JP25gm6910030、京都大学 ISHIZUE 2023、京都大学基金 研究活動推進助成、東京科学大学 難治疾患共同研究拠点、ハイスループットオミクス医学研究拠点/多層的ストレス疾患拠点: JPMXP1323015483、武田科学振興財団 研究助成、アステラス病態代謝研究会 研究助成、細胞科学研究財団:研究助成の支援により実施されました。